Sobre A Ligação Peptídica É Correto Afirmar Que

O que realmente acontece numa ligação peptídica
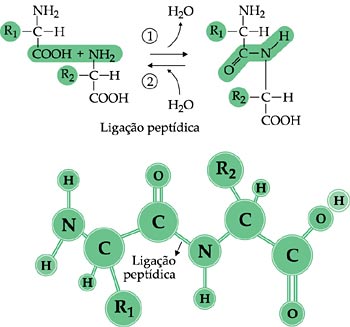
A ligação peptídica é uma ligação covalente entre o grupo carboxila de um aminoácido e o grupo amino de outro, com eliminação de uma molécula de água. Isso é o básico que todo mundo decora pra prova. O problema é que a maioria das pessoas para aí e acha que entendeu. Na prática, a realidade é muito mais complicada do que o desenho triangular dos livros didáticos. ela apresenta caráter parcialmente duplo devido à ressonância. O nitrogênio doa densidade eletrônica para o carbono carbonílico, e isso gera uma barreira rotacional que impede a livre rotação em torno da ligação C-N. O ângulo de rotação permitido é quase zero em condições fisiológicas normais, e isso é o que define a estrutura secundária das proteínas. Sem esse restrição, as proteínas não teriam estrutura definida — seriam apenas polímeros desordenados flutuando no citoplasma. Outro ponto que muita gente erra: a ligação peptídica não é simplesmente "trans" ou "cis" como se fosse uma escolha livre. Em 99,6% dos casos em proteínas, a configuração é trans. A configuração cis aparece quase exclusivamente quando o aminoácido seguinte é prolina. E mesmo aí, a proporção cis/trans gira em torno de 10% para ligações X-Pro, o que parece pouco mas é biologicamente significativo.
Quando eu comecei a trabalhar com modelagem molecular, passei meses corrigindo estruturas onde a ligação peptídica tinha sido parametrizada como ligação simples. O software tratava o ângulo diedro omega como livre, e as simulações geravam conformações absurdas — hélices alpha desfiando literalmente em milissegundos de simulação. A correção foi simples: travar omega em 180 graus para ligações não-Pro e permitir apenas o sampling restrito em torno de -30 graus para X-Pro. Mesmo assim, programas de dinâmica molecular modernos ainda às vezes falham nisso, dependendo do force field usado. O comprimento da ligação peptídica é de aproximadamente 1,32 angstrons, intermediário entre uma ligação simples C-N (1,49 angstrons) e uma ligação dupla C=N (1,27 angstrons). Esse valor intermediário é a prova físico-química direta do caráter de ressonância. A ligação C=O do mesmo grupo, por sua vez, mede cerca de 1,24 angstrons, ligeiramente mais longa que uma carbonila típica (1,20 angstrons) porque também sofre perda de caráter duplo pelo efeito da ressonância. Os ângulos de dihedro são outra armadilha comum. O plano da ligação peptídica é rígido, então os únicos ângulos que variam numa cadeia polipeptídica são phi (em torno da ligação N-C) e psi (em torno da ligação C-C'). O ângulo omega, que corresponde à rotação em torno da ligação C-N da ligação peptídica, permanece fixo. Isso reduz o espaço conformacional de uma proteína de 3 graus de liberdade por resíduo para apenas 2, e mesmo assim nem todos os pares phi/psi são permitidos — o que dá origem aos diagramas de Ramachandran que todo mundo vê mas poucos entendem de verdade.
Um detalhe que ninguém comenta nos livros: a ligação peptídica é quimicamente muito estável. A semivida de hidrólise espontânea numa proteína em pH neutro e 37°C é da ordem de centenas a milhares de anos. Isso significa que as proteases são absolutamente essenciais para o turnover proteico celular — sem elas, nenhuma proteína seria degradada de forma significativa ao longo da vida de um organismo. A estabilização do estado de transição pela enzima reduz a energia de ativação de cerca de 20 kcal/mol para valores muito menores, tornando a reação viável em escala de segundos ou minutos. Também é importante notar que a ligação peptídica em si não tem carga líquida — o grupo carbonila é parcialmente negativo e o nitrogênio parcialmente positivo, mas o momento dipolar resultante não gera carga iônica. Já a protonação do nitrogênio da ligação peptídica é extremamente desfavorecida; o pKa do nitrogênio amídico é cerca de -0,5, o que significa que em pH fisiológico ele está praticamente sempre desprotonado. Isso é diferente do que acontece com aminas livres, que têm pKa na casa de 9-10. A diferença é exatamente a ressonância que estabiliza a forma neutra. Na síntese peptídica em fase sólida, a formação da ligação peptídica é o passo crítico, e o problema real não é a reatividade em si — é a racemização. Quando se ativa o grupo carboxila com agents como HATU, DIC ou DCC, há risco de formação do oxazolona, especialmente em resíduos de cisteína e histidina. A oxazolona permite tautomerização enol-amino que leva à racemização do aminoácido ativado. O workaround que eu uso é manter a concentração de base mínima, usar aditivos como HOBt ou Oxyma para suprimir a via da oxazolona, e limitar o tempo de ativação a menos de 5 minutos antes de adicionar o próximo aminoácido. Em minha experiência, esses cuidados reduzem a racemização para menos de 0,5% por acoplamento, o que faz diferença real na pureza do produto final.

Outro ponto prático: a ligação peptídica absorve fortemente no infravermelho em torno de 1650 cm¹ (banda Amide I, majoritariamente estiramento C=O) e 1550 cm¹ (banda Amide II, combinação de flexão N-H e estiramento C-N). A espectroscopia FTIR de proteínas depende inteiramente dessas assinaturas, e a posição exata da banda Amide I varia conforme a estrutura secundária — alfa-hélice fica em torno de 1653 cm¹, beta-folha em 1630 cm¹. Se você analisar mal a baseline ou a espessura da amostra, os números ficam distortos e a interpretação da estrutura secundária sai errada. Já vi gente passar dias tentando justificar dados que eram artefato de espalhamento Mie por causa de partículas muito grossas no KBr. Em resumo, a ligação peptídica é muito mais do que um "cola" entre aminoácidos. É um grupo funcional com propriedades eletrônicas únicas, geometria restrita, estabilidade cinética extraordinária e implicações diretas em tudo que envolve estrutura e função proteica.
Galeria
-

Ligação peptídica | Aulas de Bioquímica -

Ligação peptídica - Canal CECIERJ -

A Ligação Peptídica Resulta Da União Entre O Grupo - RETOEDU -
Ligação peptídica - Só Biologia
